miércoles, 11 de mayo de 2016

Enzimas y Carbohidratos


Enzima
       ¿Que es una Enzima?

son moléculas de naturaleza proteica que catalizan reacciones químicas, siempre que sean termodinámicamente posibles: una enzima hace que una reacción química que es energéticamente posible , pero que transcurre a una velocidad muy baja, sea cinéticamente favorable, es decir, transcurra a mayor velocidad que sin la presencia de la enzima.

                                                                                            ¿Que es un Catalizador?

Un catalizador es una sustancia que acelera la llegada a un equilibrio. Un catalizador puede cambiar en forma temporal durante la reacción, pero no cambia en el proceso general, porque se recicla para participar en varias reacciones


                 Seis clases de enzimas 
  • Las oxidorreductasas : catalizan las reacciones de oxidación-reducción. La mayor parte de esas enzimas se llaman, en general, deshidrogenasas. También hay otras enzimas en esta clase que se llaman oxidasas, peroxidasas, oxigenasas o reductasas.

  •  Las transferasas catalizan las reacciones de transferencia de un grupo y pueden necesitar la presencia de coenzimas. En las reacciones de transferencia de grupo, una parte de la molécula del sustrato se suele enlazar en forma covalente con la enzima o con su coenzima                                                                                              
  • Las hidrolasas catalizan hidrólisis. Son una clase especial de transferasas donde el agua sirve como aceptor del grupo transferido.                                                  
                                             
  • Las liasas catalizan la lisis de un sustrato, al generar un enlace doble; son reacciones de eliminación, no hidrolíticas y no oxidantes. En dirección inversa, las  liasas catalizan la adición de un sustrato a un doble enlace de un segundo sustrato. Una liasa que cataliza una reacción de adición en las células es frecuentemente llamada sintasa.


  • Las isomerasas: catalizan cambios estructurales dentro de una misma molécula (reacciones de isomerización).


    • Las ligasas: catalizan la ligadura o unión de dos sustratos
    Ecuación de Michaelis-Menten


    Las reacciones catalizadas por enzimas, al igual que cualquier reacción química, se puede describir en forma matemática como ecuación de velocidad.

    La pendiente de la curva de y 0 en función de [S] es la de una hipérbola rectangular.
    Las curvas hiperbólicas son indicativas de procesos donde hay una disociación simple

    La ecuación de una hipérbola rectangular es: y=ax/b+x

    donde a es la asíntota de la curva (el valor de y a un valor de x infinito) y b es el punto del eje x que corresponde a un valor igual a a/2. En los experimentos de cinética enzimática, y y0 y x [S]. El valor asintótico (a) se llama Vmáx. Es la velocidad máxima de la reacción a concentraciones de sustrato infinitamente grandes. Con frecuencia se indica el valor de Vmáx en las gráficas de y0 contra [S], pero no es obvio por qué se escogió


    La ecuación completa de velocidad es v0 =Vmáx[S] /Km + [S]


    Esta es llamada la ecuación de Michaelis-Menten, por Leonor Michaelis y Maud Menten.
    La ecuación de Michaelis-Menten describe la relación entre la velocidad inicial de una
    reacción y la concentración del sustrato. En la sección que sigue se deducirá la ecuación
    de Michaelis-Menten por un método cinético para después examinar el significado de las diversas constantes.

    Constante catalítica kcat

    Cuando la concentración de sustrato es alta, la velocidad total de la reacción es Vmáx y está determinada por la concentración de la enzima. La constante de velocidad observada bajo estas condiciones se llama constante catalítica, Kcat, y se define como sigue:

    Vmáx = kcat[E]total 
    kcat = Vmáx/[E]total


    Significados de Km:

    La constante de Michaelis tiene varios significados define a Km como la relación de las constantes de velocidad combinadas para la descomposición de ES dividida entre la constante para su formación.

    Inhibición enzimas
    Inhibición reversible de enzima


    Inhibidor de enzima (I): compuesto que se enlaza con  enzima e interfiere con su actividad.

    • Evita la formación del complejo ES

    • Bloquea la formación del producto

    Tipos de inhibidores
    • Competitivo (I solo se une a E)
    • Acompetitivo (I solo se une a ES)
    • No competitivo (I se une a E o a ES)
    Inhibición competitiva clásica


    Los inhibidores competitivos son los que se encuentran con más frecuencia en bioquímica


    Inhibición acompetitiva

    Los inhibidores acompetitivos sólo se unen al ES y no a la enzima libre


    Inhibición no competitiva 
    Los inhibidores no competitivos se pueden unir a la E o al ES y formar complejos inactivos EI o ESI, respectivamente


    Usos de la inhibición enzimática
    La inhibición enzimática reversible permite contar con un método poderoso para determinar la actividad enzimática y para alterarla en el tratamiento de enfermedades. Se
    puede obtener información acerca de la forma y de la reactividad química del sitio activo
    de una enzima a partir de experimentos que impliquen una serie de inhibidores competitivos con estructuras alteradas en forma sistemática.

    La industria farmacéutica recurre a estudios de inhibición enzimática para diseñar
    medicamentos de uso clínico.

    Regulación de la actividad enzimática enzimas                                                alostéricas
    Son invariablemente proteínas con múltiples subunidades, convmúltiples lugares activos. Son enzimas cuyas propiedades sonvafectadas por cambio en la estructura.vCinética sigmoide, indica cooperatividad entre las subunidades.v La unión de un sustrato a uno de los sitios, afecta el enlace en los otros sitios.

    Son reguladas por la unión de:
    • Moduladores positivos

    • Moduladores negativos que pueden ser: 
                                                             Homotrópicos o homoalosterismo
    •                                                       Heterotrópicos o heteroalosterismo


    Propiedades generales de las enzimas alostéricas


  • La actividad de las enzimas alostéricas cambian debido a inhibidores y activadores metabólicos.
  • Los moduladores alostéricos se enlazan en forma No covalente a las enzimas que regulan .
  • Con pocas excepciones, las enzimas reguladoras son proteínas de subunidades múltiples.

                                                   Lisozima
    Catalizan la hidrolisis de algunos polisacáridos, en especial los que forman las paredes celulares de las bacterias. 
    Muchas secreciones la contienen:
    -lagrimas
    -saliva
    -moco nasal

    El sustrato de lisozima es un polisacárido formado por residuos alternantes de N-acetilglucosamina (GlcNAc) y ácido N-acetilmurámico (MurNAc) unidos por enlaces glicosidicos.

    Modos de enlazamiento en la catálisis enzimática
    A. El efecto de proximidad: Las altas concentraciones efectivas favorecen la formación
    mas frecuente de estados de transición
    B. Enlazamiento débil de sustratos con enzimas: Estabilización del estado de transición
    C. Ajuste inducido: La mayor parte de las enzimas tiene flexibilidad limitada, no son moléculas totalmente rígidas.
    El ajuste inducido No es un modo catalítico, sino un efecto de especificidad del sustrato
    • 1950 Daniel Koshland sugirió que la flexibilidad de la enzima interviene en la actividad catalítica y en la especificidad del sustrato.

    • Su propuesta se baso en experimentos cinéticos con hexocinasa, enzima que cataliza la fosforilacion de la glucosa por el ATP

    D. Estabilización del estado de transición: Algunos enzimologos han estimado que la estabilización del estado de transición explica casi todos los aumentos de velocidad de reacción causado por las enzimas.

    Emil Fischer, 1894
    Cerradura y su llave
    Sólo uno o muy pocos sustratos se podrían ajustar dentro de una enzima específica
    • Hay una región que es un sitio activo.
    • Se forman complejos entre los sustratos y las enzimas.

    1950 y 1960 perdió adeptos
    Hoy día esta teoría se acepta
    • Especificidad enzimática
    •  Catálisis enzimática

    La “la llave” es el estado de transición, y no la molécula de sustrato.

    Cuando el sustrato se enlaza a la enzima, la enzima distorsiona la estructura del sustrato, y lo fuerza hacia el estado de transición. 

                            Coenzimas y vitaminas

    Una coenzima es una molécula inorgánica u orgánica pequeña necesaria para la actividad de una enzima. Una coenzima es un cofactor. 

    Los tipos de cofactores se pueden distinguir además de su naturaleza por la fuerza de interacción con su apoenzima

    La apoenzima es la parte proteica de una holoenzima, es decir, una enzima que no puede llevar a cabo su acción catalítica desprovista de los cofactores necesarios, ya sean iones metálicos (Fe, Cu, Mg, etc.) u orgánicos, que a su vez puede ser una coenzima o un grupo prostético, dependiendo de la fuerza de sus enlaces con la apoenzima. La apoenzima, es por tanto, catalíticamente inactiva, hasta que se le une el cofactor adecuado.


    Aplicación de las Enzimas en Farmacia

    Puesto que las aplicaciones médicas y farmacéuticas abarcan un amplio espectro de materias, es conveniente dividirlas en tres áreas importantes de interés: terapias enzimáticas, usos analíticos y producción de compuestos farmacéuticos.


    A diferencia de otros usos industriales de las enzimas, las aplicaciones médicas y farmacéuticas de las mismas, requieren generalmente pequeñas cantidades de enzimas altamente purificadas. En parte, esto refleja el hecho de que para que una enzima sea efectiva, solo debe modificarse el o los compuestos de interés contenidos en un fluido o tejido fisiológico complejo.

    Tratamientos terapéuticos con enzimas


    Esta forma de terapia, se basa en la administración de una enzima específica a un paciente, para producir una mejoría progresiva en el mismo; el principal problema relacionado con este método, es la respuesta inmunológica del organismo la cual inactiva al compuesto incorporado. Además, si el destino de una enzima o de un producto obtenido por métodos enzimáticos es su administración a un paciente, resulta evidente que el preparado debe contener las menores cantidades posibles de material extraño para evitar efectos secundarios.
    Uno de los productos obtenidos mediante el uso de enzimas son los aminoácidos.
    Si bien se pueden sintetizar empleando un proceso químico, el resultado es una mezcla de dos tipos distintos (D y L isómeros).

    Puesto que solamente el L-isómero es biológicamente activo, la mezcla debe ser separada en sus dos componentes. (Utilizadas para el Control de neoplasmas.)

    Además de aminoácidos, las enzimas son utilizadas para la producción de antibióticos semi-sintéticos. Las penicilinas semisintéticas son los principales productos farmacéuticos obtenidos por tecnología enzimática.

    Carbohidratos


    Los carbohidratos son uno de los principales nutrientes en nuestra alimentación. Estos ayudan a proporcionar energía al cuerpo. Se pueden encontrar tres principales tipos de carbohidratos en los  alimentos: azúcares, almidones y fibra.


    La mayor parte de los monosacáridos son compuestos quirales


    Los monosacáridos son sólidos blancos, cristalinos y solubles en agua que tienen sabor dulce. Entre los ejemplos están la glucosa y la fructosa. Desde el punto de vista químico, los monosacáridos son polihidroxi aldehídos o aldosas, o polihidroxi cetonas o cetosas. Se clasifican por el tipo de grupo carbonilo y por la cantidad de átomos de carbono. Como regla, se usa el sufijo -osa para dar nombre a los carbohidratos, aunque hay varias excepciones. Todos los monosacáridos tienen al menos tres átomos de carbono.


    Composición de los carbohidratos
    • Están formados por carbono (C), hidrogeno (H) y oxigeno (O).
    • Presentan la formula química general (CH2O)n.
    • Todos los carbohidratos presentan grupos funcionales -C=O o –OH.


    Fuentes de carbohidratos
    Son los compuestos orgánicos mas abundantes en la naturaleza
    • Los carbohidratos se encuentran de forma abundante en las plantas y en pequeñas cantidades en animales.
    • Las plantas nos proveen de todos los hidratos de carbono mediante la alimentación.
    Los carbohidratos pueden ser: Aldosas y Cetosas
    • Gliceraldehido es un aldehído y 
      estos monosacáridos se 
      denominamos aldosas
    • Dihidroxiacetona:  
      es una cetona y estos monosacáridos se denominan cetosas
    Aldosas
    Los aldehídos este grupo carbonilo se encuentra en un extremo de la cadena hidrocarbonada, por lo que tiene un átomo de hidrógeno unido a él directamente, que suele escribirse, por comodidad, en la forma —CHO. Según el tipo de grupo hidrocarbonado unido al grupo funcional, los aldehídos pueden ser alifáticos, R—CHO, y aromáticos, Ar— CHO.


    Cetosas
    Las cetonas el grupo carbonilo se encuentra unido a dos grupos hidrocarbonados. Según el tipo de grupo hidrocarbonado unido al grupo funcional, las cetonas se clasifican en alifáticas, R—CO—R' aromáticas, Ar—CO— Ar, y mixtas; R—CO—Ar.


    Estereoisomeros

    Epimeros


    Los azúcares que difieren en un sólo centro quiral se llaman epímeros.  Así, la galactosa es epímero de la glucosa ya que difiere en el centro quiral del carbono 4.  La Manosa también es epímero de la glucosa, ambos azúcares difieren en el centro quiral de la posición 2.

    Isomeros


    La isomería es una propiedad de aquellos compuestos químicos que 
    con igual fórmula molecular (fórmula química no desarrollada) de 
    iguales proporciones relativas de los átomos que conforman su 
    molécula, presentan estructuras químicas distintas, y por ende, 
    diferentes propiedades.


    Clasificación de los Carbohidratos

    Monosacáridos
    • Los monosacáridos son azúcares simples.
    • No se hidrolizan, es decir, que no se descomponen en 
      otros compuestos más simples.
    • Poseen de 3 a 7 átomos de carbono.
    •  Su fórmula empírica es (CH2O)n donde n ≥ 3.
    Monosacáridos mas importantes
    • Glucosa  
    • Fructosa
    • Galactosa
    • Ribosa
    • Desoxiribosa
    Polisacaridos


    Con frecuencia se divide a los polisacáridos en dos clases extensas. 


    • Los homoglicanos (u homopolisacáridos) son polímeros que sólo contienen residuos de un tipo de monosacárido.
    • Los heteroglicanos (o heteropolisacáridos) son polímeros que contienen residuos de más de un tipo de monosacárido
    Conformación de los monosacáridos

    La estabilidad relativa de cada conformación depende del grado de interferencia estérica entre los grupos hidroxilo.

    • Proyección de Haworth son las mas utilizadas en bioquímica. Sin embargo, la geometría de los átomos de carbono en un anillo monosacáridos es tetraédrica (110o).
    • Los monosacáridos cíclicos pueden tener diversas conformaciones, o formas tridimensionales.
    •  Los anillos furanosas adoptan conformaciones de sobre o torcida.
    Los 2 CONFORMEROS en silla de la -D-glucopiranosa


    Derivados de los monosacáridos


    Monosacáridos

    • -Fosfato de azúcar
    • -Desoxi y amino azucares
    • -Azucares alcoholes
    • -Azucares ácidos
    • -Ácidos ascórbico (vitamina C).

    Monosacáridos polimerizados

    (oligosacáridos y los polisacáridos).


    Clasificación de los polisacáridos según su función:

    Polisacáridos de reserva 
    • Almidón
    • Glucógeno
    Polisacáridos 
    estructurales

    • Celulosa
    • Quitina
    Glicoconjugados

    • Proteoglicanos
    • Peptidoglicanos
    • Glicoproteínas
    Función de los Oligosacaridos en Glucoconjugacion


    • Estructural
    • puede afectar la estabilidad 
    • señales en crecimiento celular
    • plegados en proteina
    Proteoglicanos: Los proteoglicanos son complejos de proteínas y una clase de polisacáridos llamados glicosaminoglicanos.


    Peptidoglicanos: son polisacáridos unidos a péptidos pequeños.

    Glicoproteínas: son proteínas que contienen oligosacáridos unidos en forma covalente
    son un grupo diverso de proteínas que abarcan enzimas, hormonas, proteínas estructurales y proteínas de transporte.

    Vías metabólicas de los carbohidratos
    Destino del Piruvato

    • El piruvato puede convertirse en acetil- CoA por acción de piruvato deshidrogenasa. La acetil-CoA se puede usar en varias rutas metabólicas.
    • El piruvato se puede carboxilar y producir oxalacetato precursor en la gluconeogénesis.
    • En algunas especies, se puede reducir piruvato para formar etanol
    • En algunas especies el piruvato se puede reducir a lactato

    El piruvato es el punto inicial para la síntesis de glucosa

    Regulación del metabolismo de glucógeno por las hormonas


    Las principales hormonas que controlan el metabolismo del glucógeno en los mamíferos son la insulina, el glucagón y la epinefrina.

    La insulina es una proteína 
    con 51 residuos, sintetizada 

    por las células del páncreas, y 

    se secreta cuando aumenta la 

    concentración de la glucosa 

    en la sangre.
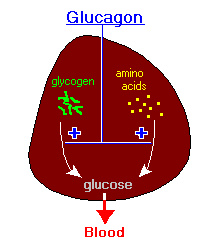


    El glucagón es una hormona que contiene 29 residuos de aminoácido y la segregan células a del páncreas como respuesta a baja concentración de glucosa en la sangre.


    jueves, 21 de abril de 2016

    agua, peptido,aminoácidos y proteina

    El Agua
     

    Es probable que la vida se haya originado en el agua, hace más de tres mil millones de años, y que todas las células vivientes sigan dependiendo del agua para existir. En la mayor parte de las células el agua es la molécula más importante y forma de 60 a 90% de su masa.

    La molécula de agua (H2O) tiene forma de V y el ángulo entre los dos enlaces covalentes O—H es de 104.5°. Algunas propiedades importantes del agua se deben a la forma angulada y a los enlaces intermoleculares que puede formar. Un átomo de oxígeno tiene ocho electrones y su núcleo cuenta con ocho protones y ocho neutrones.

    Una de las consecuencias importantes de la polaridad de la molécula de agua es que dichas moléculas se atraen entre sí. La atracción entre uno de los átomos de hidrógeno, ligeramente positivo, de una molécula de agua y los pares de electrones parcialmente negativos en uno de los orbitales híbridos sp3, produce un “puente de hidrógeno”. En un puente de hidrógeno entre dos moléculas de agua, el átomo de hidrógeno permanece enlazado covalentemente a su átomo de oxígeno que es el donador de hidrógeno. Al mismo tiempo, está unido a otro átomo de oxígeno, llamado aceptor de hidrógeno. El agua no es la única molécula capaz de formar puentes de hidrógeno; esas interacciones pueden existir entre cualquier átomo electronegativo y un átomo de hidrógeno unido a otro átomo electronegativo. Los puentes de hidrógeno son mucho más débiles que los enlaces covalentes típicos. En los puentes de hidrógeno, la orientación es importante. Un puente de hidrógeno es más estable cuando el átomo de hidrógeno y los dos átomos electronegativos asociados a él forman casi una línea recta.

    Hay otras dos propiedades del agua que se relacionan con sus característicos puentes de hidrógeno: su calor específico y su calor de evaporación. El calor específico de una sustancia es la cantidad de calor necesario para elevar 1°C la temperatura de 1 gramo de la sustancia. A esta propiedad también se le llama capacidad calorífica o capacidad térmica.

    Las propiedades físicas del agua se combinan para hacerla un excelente solvente. Ya se estudió que las moléculas de agua son polares; esta propiedad ejerce consecuencias importantes, como se verá después. Además, el agua posee una viscosidad intrínseca que no impide mucho el movimiento de las moléculas disueltas en ella.

    El agua puede interactuar y disolver otros compuestos polares y compuestos que se ionizan. La ionización se relaciona con la ganancia o pérdida de un electrón, que da lugar a un átomo o a un compuesto que presenta una carga neta.

    Además de sus propiedades físicas, las propiedades químicas del agua también son importantes en bioquímica, porque las moléculas de agua pueden reaccionar con moléculas biológicas. A las sustancias ricas en electrones se les llama nucleófilos (“amantes” del núcleo) porque buscan especies con carga positiva, o con deficiencia en electrones, llamadas electrófilos (“amantes” del electrón). Los nucleófilos pueden tener carga negativa o contar con pares no compartidos de electrones. Los átomos nucleófilos más comunes en biología son de oxígeno, nitrógeno, azufre y carbono.

    Una de las propiedades importantes del agua es su pequeña tendencia a ionizarse. El agua pura no está formada sólo por H2O, sino también por una baja concentración de iones hidronio (H3O_) y una concentración igual de iones hidróxido (OH_).

    La ionización del agua se puede representar entonces como una disociación simple de un protón a partir de una sola molécula de agua. Los iones hidróxido pueden aceptar un protón y convertirse de nuevo en moléculas de agua.

    La ionización del agua se puede analizar cuantitativamente. Recuérdese que las concentraciones de reactivos y productos en una reacción deben llegar al equilibrio. La relación de esas concentraciones define a la constante de equilibrio (Keq). En el caso de a ionización del agua

    Los ácidos y bases que se disocian por completo en agua, como el ácido clorhídrico y el hidróxido de sodio, se llaman ácidos fuertes y bases fuertes. Hay muchos otros ácidos y bases, como por ejemplo los aminoácidos que forman las proteínas y las purinas y pirimidinas del ADN y ARN, que no se disocian por completo en el agua. A dichas sustancias se les conoce como ácidos débiles y bases débiles.

    El ion cloruro es la base que corresponde al HCl después que cede su protón. Al Cl_ se le llama la base conjugada del HCl, lo que indica que es una base, es decir, que puede aceptar un protón, y es parte de un par ácido base (es decir, HCl/Cl_). De igual modo, el H3O_ es el ácido en el lado derecho del equilibrio porque puede donar un protón. H3O_ es el ácido conjugado del H2O.

    Aminoácidos

    Los Aminoácidos están formados por un grupo Carboxilo y uno amino

    Estructura general de los aminoácidos 


    Todos los organismos emplean los mismos 20 aminoácidos como bloques constructivos para armar las moléculas de proteína.  A estos 20 aminoácidos se les llama aminoácidos comunes, estándar o normales.  A pesar de la poca cantidad de los aminoácidos, se puede obtener una variedad enorme de distintos polipéptidos al unir los 20 aminoácidos comunes para formar distintas combinaciones.

    Los aminoácidos se llaman así porque son derivados aminados de ácidos carboxílicos.
    En los 20 aminoácidos comunes, los grupos amino y carboxilo están unidos al mismo átomo de carbono: el átomo de carbono a. Así, todos los aminoácidos estándar que contienen las proteínas son a-aminoácidos. 

    Al carbono a se unen otros dos sustituyentes: un átomo de hidrógeno y una cadena lateral (R) que es única para cada aminoácido. En los nombres químicos de los aminoácidos, los átomos de carbono se identifican con números que comienzan en el átomo de carbono del grupo carboxilo.

    Es probable que las primeras proteínas estuvieran formadas por una pequeña cantidad
    de aminoácidos simples, y la selección de aminoácidos L frente a aminoácidos D
    fuera un evento aleatorio. Los organismos vivos modernos no seleccionan aminoácidos
    L de una mezcla ya que sólo sintetizan aminoácidos L en cantidades suficientes. Así, el
    predominio de aminoácidos L en las especies modernas se debe a la evolución de las rutas

    metabólicas que producen aminoácidos L y no aminoácidos D

    A. Grupos R alifáticos

    La glicina (Gly, G) es el aminoácido más pequeño porque su grupo R no es más que un átomo
    de hidrógeno; en consecuencia, el carbono a de la glicina no es quiral. Los dos átomos
    de hidrógeno del carbono a de la glicina imparten poco carácter hidrofóbico a la molécula.
    Después habrá oportunidad de comprobar que la glicina desempeña un papel único en la
    estructura de muchas proteínas porque su cadena lateral es lo bastante pequeña como para

    tener cabida en nichos en los que a otros aminoácidos les resultaría imposible hacerlo.
    Hay cuatro aminoácidos: alanina (Ala, A), valina (Val, V), leucina (Leu, L) y el isómero estructural de la leucina, isoleucina (Ile, I), que tienen cadenas laterales alifáticas saturadas. La cadena lateral de la alanina es un grupo metilo, mientras que la valina presenta una cadena lateral ramificada con tres carbonos, y la leucina y la isoleucina contienen una cadena lateral ramificada de cuatro carbonos cada una. Los átomos de carbono a y b de la isoleucina son asimétricos. Ya que la isoleucina tiene dos centros quirales, posee cuatro estereoisómeros posibles

    B. Grupos R aromáticos

    La fenilalanina (Phe, F), tirosina (Tyr, Y) y el triptófano (Trp, W) presentan cadenas laterales con grupos aromáticos. En el caso de la fenilalanina es una cadena hidrofóbica
    bencílica. La tirosina se parece estructuralmente a la fenilalanina; en la tirosina, un grupo
    hidroxilo sustituye al hidrógeno para de la fenilalanina lo que la convierte en un fenol. El grupo hidroxilo de la tirosina es ionizable, pero bajo condiciones fisiológicas normales retiene su hidrógeno. La cadena lateral del triptófano contiene un grupo indol bicíclico. La tirosina y el triptófano no son tan hidrofóbicos como la fenilalanina porque en sus cadenas laterales hay grupos polares. Los tres aminoácidos aromáticos absorben luz ultravioleta (UV) porque, a diferencia de los aminoácidos alifáticos


    C. Grupos R sulfurados

    La metionina (Met, M) y la cisteína (Cys, C) son los dos aminoácidos azufrados. La metionina contiene un grupo tioéter metilo, no polar, en su cadena lateral, lo que la convierte en uno de los aminoácidos más hidrofóbicos. La metionina desempeña un papel especial en la síntesis de proteínas porque casi siempre representa el primer aminoácido en una cadena de polipéptido. La estructura de la cisteína se parece a la de la alanina, con un átomo de hidrógeno reemplazado por un grupo sulfhidrilo

    D. Grupos R básicos
    La histidina (His, H), lisina (Lys, K) y arginina (Arg, R) presentan cadenas laterales hidrofílicas que son bases nitrogenadas y tienen carga positiva a pH 7. La cadena lateral de la histidina contiene un sustituyente de anillo de imidazol. La forma protonada de este anillo se llama ion imidazolio


    E. Grupos R ácidos y sus amidas derivadas

    El aspartato (Asp, D) y el glutamato (Glu,E) son aminoácidos dicarboxílicos y tienen cadenas laterales hidrofílicas con carga negativa a pH 7. Además de los grupos carboxilo a, el aspartato posee un grupo carboxilo b y el glutamato un grupo carboxilo g. El aspartato y el glutamato confieren carga negativa a las proteínas porque sus cadenas laterales se encuentran ionizadas a pH 7. A veces se les llama ácido aspártico y ácido glutámico, respectivamente, pero bajo la mayoría de las condiciones fisiológicas se encuentran como bases conjugadas y, al igual que otros carboxilatos, tienen el sufijo ato

    Peptidos

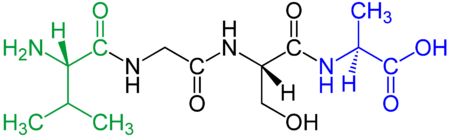
    Son cadenas de aminoácidos

    El enlace peptidico: Unión de dos aminoácidos

    • Enlace covalente tipo amida
    • Reacción de condensación 
    • Se elimina H2O
    • La unión de dos aa da lugar a un dipeptidos


    El oxigeno del carbonilo tiene una carga negativa parcial y el nitrógeno de la amida una carga parcial positiva, la creación de un pequeño dipolo eléctrico.

    La conformacion trans del enlace peptidicos
                                            
    El enlace peptidico presenta usualmente conformación trans del oxigeno del carbonilo con respecto al hidrogeno de la amida


    El enlace peptidico es plano y rígido 
    • Los enlaces peptidicos  no pueden rotar libremente
    • El esqueleto de la cadena polipeptidica es una seria de planos rígidos que comparten un punto común de rotación. 


    Reacción del grupo amino

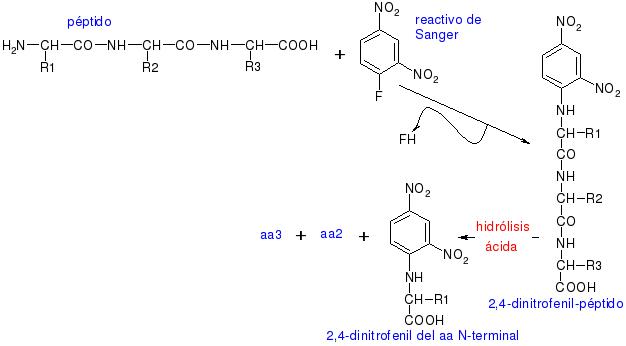
    es muy interesante la reacción con el reactivo de Sanger para secuenciar, ya que si tenemos el 2,4-dinitrofenil-péptido y lo hidrolizamos por hidrólisis ácida, se hidrolizarán todos los enlaces peptídicos y obtendremos el dinitrofenil del primer aminoácido de la secuencia, el –NH2 terminal, más el resto de los aminoácidos disgregados en el medio.
    Con esta reacción Sanger consiguió secuenciar la insulina.
    En esta reacción, el núcleo coloreado de dinitrobenceno se une al átomo de nitrógeno del aminoácido para producir un derivado amarillo, el derivado 2,4-dinitrofenil o DNP-aminoácido. El compuesto DNFB reaccionara con el grupo amino libre del extremo amino de un polipéptido, así como también con los grupos amino de los aminoácidos libres. El enlace C–N que se forma es por lo general mucho más estable que un enlace peptídico. De esta forma, haciendo reaccionar una proteína nativa o un polipéptido intacto con el DNFB, hidrolizando la proteína en ácido y aislando los DNP-aminoácidos coloreados, puede identificarse el grupo amino terminal del aminoácido en una cadena polipeptídica. El grupo amino terminal de la lisina y algunos otros grupos funcionales de las cadenas laterales también reaccionarán con el DNFB.
    Sin embargo, después de la hidrólisis, solo el derivado del grupo amino terminal del aminoácido original tendrá su grupo α-amino bloqueado; asimismo, tales DNP-α-aminoácidos pueden separarse de otros derivados DNP mediante procedimientos de extracción simples. Con cualquiera de los variados métodos cromatográficos se podrá identificar a los DNP-α-aminoácidos

    Pept1.jpg

    Pero este proceso consume mucha energía, ya que, teniendo el primer aminoácido hay que obtener los demás rompiendo por otras zonas. Esto se evita con la degradación de Edman (también es una reacción de aminoácidos): Como la ciclación se da en condiciones ácidas suaves, no se rompen los enlaces, y se da la feniltiohidantoína del aminoácido –NH2 terminal y queda el resto del péptido intacto.


    Pept2.jpg 


    Proteínas

    Los prótidos o proteínas son biopolímeros, están formadas por un gran número de unidades estructurales simples repetitivas (monómeros) denominado aminoácidos, unidas por enlaces peptídicos. Debido a su gran tamaño, cuando estas moléculas se dispersan en un disolvente adecuado, forman siempre dispersiones coloidales, con características que las diferencian de las disoluciones de moléculas más pequeñas. Muchas proteínas presentan carga neta en ciertos rangos de pH del medio. Por ello pueden considerarseionómeros.

    Por hidrólisis, las moléculas de proteína se dividen en numerosos compuestos relativamente simples, de masa molecular pequeña, que son las unidades fundamentales constituyentes de la macromolécula. Estas unidades son los aminoácidos, de los cuales existen veinte especies diferentes y que se unen entre sí mediante enlaces peptídicos. Cientos y miles de estos aminoácidos pueden participar en la formación de la gran molécula polimérica de una proteína.
    Todas las proteínas tienen carbono, hidrógeno, oxígeno y nitrógeno, y casi todas poseen también azufre. Si bien hay ligeras variaciones en diferentes proteínas, el contenido denitrógeno representa, por término medio, 16 % de la masa total de la molécula; es decir, cada 6,25 g de proteína contienen 1 g de N. El factor 6,25 se utiliza para estimar la cantidad de proteína existente en una muestra a partir de la medición de N de la misma.
    La síntesis proteica es un proceso complejo cumplido por las células según las directrices de la información suministrada por los genes.
    Las proteínas son largas cadenas de aminoácidos unidas por enlaces peptídicos entre el grupo carboxilo (-COOH) y el grupo amino (-NH2) de residuos de aminoácido adyacentes. La secuencia de aminoácidos en una proteína está codificada en su gen (una porción de ADN) mediante el código genético

    Las proteinas se dividen en estructuras
    • Estructura Primaria: Secuencia de aminoácidos en el polipeptido.
    • Estructura Secundaria: Arreglo espacial local de los átomos de la cadena                                                                     del  polipeptido
    • Estructura terciaria: Estructura tridimensional de todo el polipeptido
    • Estructura Cuaternaria: Arreglo espacial de las subunidades de proteica compuesta                                                  por múltiples polipeptidos. 

    Los polipeptidos se pueden separar y purificar 

                                               Tipos de cromatografias: 

    • Cromatografia en columna
    • Cromatografia de intercambio ionico
    •  Cromatografia de exclusion por tamaño 
    • Cromatografia de afinidad

    Las proteinas tambien se pueden separ por electroforesis: Desplazamiento de la proteina cargada en un campo electrico


    La composición de aminoácidos de las proteínas se pueden determinar cuantitativa mente